
2026-09-23
Резюме
Эпидемический диарейный синдром свиней (PED), вызываемый вирусом эпидемического диарейного синдрома свиней (PEDV), по-прежнему остается одним из наиболее разрушительных заболеваний в свиноводстве; после заражения у кормящих поросят смертность может достигать 90–100 % из-за сильной дегидратации и электролитного дисбаланса. Пассивная иммунизация яичными антителами (IgY) представляет собой весьма перспективную терапевтическую стратегию. В данном исследовании был создан новый рекомбинантный аденовирус rADM-IFN-G-ped, который ко-экспрессирует выбранный антигенный участок белка S PEDV и куриный интерферон-γ (ChIFN-γ) в качестве молекулярного адъюванта. С помощью этого конструкта были иммунизированы несушки для получения PEDV-специфического IgY, после чего антитела были очищены из яиц методом осаждения полиэтиленгликолем (PEG-6000). Индуцированный IgY обладал высокой нейтрализующей активностью в отношении PEDV in vitro, при этом титр нейтрализации (NT₅₀) составил 1:96, что значительно превышало показатель для IgY, полученного от куриц-несушек, иммунизированных коммерческой инактивированной вакциной PEDV G2b (NT₅₀ = 1:52). В ходе испытаний пассивного иммунизации и заражения вирусом у поросят, обработанных IgY, полученным из rADM-IFN-G-ped, после заражения сильным штаммом PEDV-NX-2022 количество вирусной РНК в фекалиях значительно снизилось по сравнению с контрольной группой. Важно отметить, что все поросята из контрольной группы, подвергшиеся заражению, погибли в течение 72 часов, тогда как выживаемость в группе, обработанной IgY, составила 50 %. Гистопатологическое исследование тканей кишечника дополнительно подтвердило защитный эффект, показав, что обработка IgY значительно уменьшает атрофию ворсинок тонкой кишки, некроз эпителия и инфильтрацию воспалительных клеток. Вышеуказанные результаты показывают, что иммунизация несушек рекомбинантным аденовирусом rADM-IFN-G-ped вызывает сильный иммунный ответ, что приводит к выработке IgY, обладающих защитным действием. Данное исследование, подтверждающее концепцию, установило осуществимость использования платформы IgY на основе мультиэпитопного аденовируса в качестве стратегии пассивного иммунизации против PEDV.
Ключевые слова: вирус эпидемической диареи свиней (PEDV); аденовирусная векторная вакцина; яичные антитела (IgY); поросята
1
Введение
Эпидемический диарейный синдром свиней (PED), вызываемый вирусом эпидемического диарейного синдрома свиней (PEDV), является одной из болезней, наносящих наибольший экономический ущерб свиноводству во всем мире. Клинические симптомы включают острую диарею, рвоту и обезвоживание; смертность новорожденных поросят может достигать 90–100 %. Такая высокая восприимчивость в основном обусловлена неполноценным развитием иммунной системы и слабой способностью компенсировать значительную потерю жидкости и электролитов. Секреторный иммуноглобулин А (sIgA) играет ключевую роль в слизистой иммунной защите от кишечных патогенов, таких как PEDV. sIgA транспортируется через эпителий слизистой оболочки и секретируется в молозиво, обеспечивая кормящимся поросятам жизненно важный пассивный иммунитет (иммунитет, передаваемый с молоком). Поэтому в настоящее время основной стратегией профилактики и контроля в стадах свиноматок является вакцинация во время беременности инактивированными или аттенуированными живыми вакцинами с целью стимулирования выработки sIgA, передаваемого с молоком. Однако традиционные внежелудочно-кишечные методы вакцинации (например, внутримышечные инъекции) зачастую не позволяют индуцировать сильный слизисто-иммунный ответ в организме свиноматок, что приводит к недостаточной передаче sIgA по оси «кишечник–молочная железа–sIgA», в результате чего поросята по-прежнему подвержены репликации кишечного вируса, тяжелой диарее и даже гибели. Кроме того, вследствие генетической дрейфа постоянно появляются мутантные штаммы PEDV, что может ослабить защитную эффективность существующих коммерческих вакцин. Указанные ограничения подчеркивают необходимость разработки альтернативных стратегий, таких как прямой пероральный ввод поросятам патоген-специфических антител для обеспечения пассивного иммунитета.
Антитела из яичного желтка (IgY) стали весьма перспективным средством пассивного иммунизации. Путем иммунизации кур-несушек можно экономично и эффективно производить IgY в больших масштабах, и уже подтверждена их защитная эффективность против множества кишечных патогенов. Исследования показывают, что PEDV-специфический IgY, полученный путем иммунизации кур инектируемыми инактивированными вирусами или рекомбинантным белком S1, способен обеспечить значительную защиту поросят при заражении вирусом. Это подтверждает, что IgY является перспективным кандидатом для стратегии пассивной иммунной профилактики PED.
Вектор аденовируса 5-го типа (Ad5) благодаря своим превосходным свойствам успешно используется в разработке множества ветеринарных и человеческих вакцин. К этим характеристикам относятся: четкий геномный фон, высокая эффективность трансдукции в различных типах клеток (включая клетки птиц и млекопитающих), возможность получения вирусных запасов с высоким титром, а также способность мощно индуцировать реакции humoralного и клеточного иммунитета. Важно отметить, что вектор Ad5 является нереплицирующимся и не интегрируется в геном хозяина, что обеспечивает его высокую безопасность. Стоит отметить, что рекомбинантный вектор Ad5 демонстрирует потенциал в индукции слизистого иммунитета, что особенно важно для вакцин против кишечных заболеваний. Его успешное применение в вакцинах против псевдобешенства, классической чумы свиней и гриппа подчеркивает широкую применимость данного вектора в качестве вакцинной платформы. Гликопротеин шипа (S) вируса PEDV отвечает за адгезию и проникновение вируса и является основной мишенью для нейтрализующих антител, что делает его идеальным антигеном для разработки вакцин. В настоящее время изучено множество рекомбинантных вакцин, экспрессирующих белок S или его функциональные домены, включая вакцины на основе лактобактерий, аттенуированных штаммов сальмонеллы и векторов параопоксвируса. Первая вакцина против PEDV, получившая условное разрешение в США, также представляет собой репликонную вакцину на основе белка S. Все эти данные в совокупности подтверждают статус белка S как ключевой мишени для субадиничных и векторных вакцин.
В настоящее время большинство доступных на рынке вакцин против PEDV разработаны на основе классических штаммов или ранних мутантных штаммов, что сопряжено со значительными ограничениями: традиционные инактивированные вакцины содержат мало эффективных антигенов и не способны эффективно индуцировать слизистивый или клеточный иммунитет; хотя аттенуированные живые вакцины способны вызывать образование нейтрализующих антител с высоким титром, они сопряжены с риском реверсии вирулентности и рекомбинации с дикими штаммами. Ещё большую проблему представляет тот факт, что белок S, являющийся ключевой антигенной мишенью, часто мутирует, что приводит к несовпадению вакцинного штамма с циркулирующими штаммами генотипа GII, а темпы разработки вакцин значительно отстают от темпов эволюции вируса.
С учетом текущих вызовов в области профилактики и борьбы с PED в рамках данного исследования была разработана новая рекомбинантная вакцина на основе Ad5 (rADM-IFN-G-ped), которая экспрессирует четыре ключевых нейтрализующих эпитопных области белка S циркулирующего штамма G2b PEDV-NX-2022 (аминокислоты 19–44, 54–146, 298–315 и 475–774). Этот мультиэпитопный антиген коэкспрессируется с куриным интерфероном-γ (ChIFN-γ), который выступает в качестве молекулярного адъюванта и, как ожидается, усиливает общую иммуногенность за счет стимулирования презентации антигена и Т-клеточного ответа. Соответствующие исследования показывают, что мультиэпитопные вакцины теоретически представляют собой перспективный подход к формированию стойкого иммунитета против патогенов. Многоэпитопные вакцины уже продемонстрировали эффективность в отношении различных вирусов, включая вирус гриппа А, геморрагическую лихорадку, Эболу и вирус гепатита С. Помимо исключения нежелательных антигенов, многоэпитопные вакцины обладают дополнительным преимуществом по сравнению с традиционными вакцинами, поскольку они объединяют множество белков с различными биологическими функциями, что позволяет более эффективно активировать клеточный и гуморальный иммунные ответы. Исходя из вышеуказанных принципов, мы предположили, что иммунизация кур-несушек этим рекомбинантным аденовирусом может стимулировать выработку нейтрализующего IgY с высоким титром; последующая очистка этого IgY и его пероральное введение поросятам станет эффективной стратегией пассивного иммунизации, направленной на снижение летальности и вирусной экскреции после заражения вирусом PEDV. Эта стратегия призвана обойти ограничения молочного иммунитета и обеспечить прямую и немедленную защиту группы наибольшего риска — новорожденных поросят. Следует отметить, что данное исследование проводилось в качестве доказательства концепции для подтверждения эффективности платформы в целом и не включало данных прямого сравнения, позволяющих количественно оценить конкретный вклад мультиэпитопной формы по сравнению с полноразмерным или однодоменным антигеном.
2
Материалы и методы
2.1 Вирусы, клетки и лабораторные животные. Виропатогенный штамм PEDV G2b PEDV-NX-2022 (номер регистрации в GenBank: PZ161424) был выделен и сохранен в нашей лаборатории. Клетки HEK 293 и аденовирусная система AdMax были приобретены у компании Shandong Weizhen Biotechnology Co., Ltd. (Цзинань). Клетки Vero были любезно предоставлены профессором Чжэн Хунцином из Сяньянского профессионально-технического колледжа. Клетки HEK 293 (ATCC® CRL-1573™) и Vero (ATCC® CCL-81™) культивировали в среде DMEM, содержащей 10 % сыворотки плода быка (Gibco, США), 100 ЕД/мл пенициллина и 100 мкг/мл стрептомицина (Gibco, Гранд-Айленд, Нью-Йорк, США) при температуре 37 °C в инкубаторе с 5 % CO₂. 60 кур-несушек породы Хайлан Браун в возрасте 25 недель были приобретены в инкубатории Нанкинского института птицеводства (Нанкин). Куры содержались в индивидуальных клетках в условиях контролируемой среды с свободным доступом к корму и воде. 18 гибридных поросят 4-дневного возраста (породы Дюрок × Чанбай × Дабай), отрицательных на PEDV по результатам ПЦР, были приобретены на коммерческой свиноферме без истории вспышек PEDV (свиноферма Луган, Нанкин). Поросята были случайным образом распределены и содержались в отдельных изолированных блоках с фильтрами HEPA в помещении второго уровня биобезопасности. Все эксперименты на животных проводились в строгом соответствии с руководящими принципами Комитета по управлению и использованию лабораторных животных Нанкинского университета Сяочжуан; протокол эксперимента был одобрен данным комитетом (номер разрешения: IACECNXU20250725).
2.2 Конструирование и подготовка рекомбинантного аденовируса Конструирование рекомбинантного аденовируса началось с разработки мультиэпитопного антигена. С помощью модуля Protean программного обеспечения DNASTAR 11.0 был проведен биоинформатический анализ S-белка штамма PEDV G2b PEDV-NX-2022, и на основе опубликованных данных об эпитопах B-клеток PEDV были идентифицированы ключевые нейтрализующие эпитопные области. Были выбраны четыре ключевых участка (аминокислоты 19–44, 54–146, 298–315 и 475–774). Эти эпитопные последовательности были соединены in vitro с помощью гибкого линкера (GGGGS)₃. Для повышения иммуногенности вакцинного кандидата разработанный мультиэпитопный фрагмент был с помощью P2A-саморазрезающегося пептидного линкера слит с участком, расположенным выше гена куриного интерферона-γ (ChIFN-γ), что обеспечивает независимую трансляцию обоих белков из одной двойного транзона МРНК. Конечный конструкт, оптимизированный с учётом кодонов, предпочтительных для кур, был полностью синтезирован компанией Qingke Biotechnology Co., Ltd. (Сиань) и клонирован в вектор pUC57. Для получения аденовируса синтезированный генный фрагмент был вырезан и с помощью ДНК-лигазы T4 сублигирован в сайты расщепления AsiSI и MluI аденовирусной шаттл-плазмиды pADM-CMV-C-FH, в результате чего была создана рекомбинантная шаттл-плазмида pADM-CMV-C-FH-IFN-G-ped. Правильность конструирования плазмиды подтвердили с помощью двойного расщепления ферментами AsiSI и MluI и электрофореза в 1 %-ном агарозном геле. Рекомбинантный аденовирус был получен путем совместной трансфекции линеаризованной шаттл-плазмиды pADM-CMV-C-FH-IFN-G-ped и аденовирусной каркасной плазмиды pAdeasy-1 в клетки HEK 293 с использованием трансфекционного реагента Lipofectamine 3000 (Invitrogen, Карлсбад, Калифорния, США) в соответствии с инструкцией. Наблюдали за появлением эффекта клеточной лезии (CPE). Предварительное название вирусного штамма — rADM-IFN-G-ped; его получали путем трёхкратного замораживания-размораживания и лизиса. Затем на клетках HEK 293 проводили три раунда очистки по методу «белых пятен» для получения клонированного очищенного вирусного штамма. Очищенный вирус размножали в клетках HEK 293, а вирусную суспензию с высоким титром готовили и концентрировали с помощью ускоренной центрифугирования на плотностном градиенте CsCl. Инфекционный титр окончательно очищенной вирусной суспензии rADM-IFN-G-ped определяли методом TCID₅₀ на клетках HEK 293; результаты выражали в единицах TCID₅₀/мл.
2.3 Проверка экспрессии рекомбинантного белка in vitro проводилась с использованием двух взаимодополняющих иммунологических методов — вестерн-блоттинга и непрямой иммунофлюоресценции (IFA) — для подтверждения экспрессии эпитопа белка S вируса PEDV рекомбинантным аденовирусом. При вестерн-блоттинге клетки HEK 293 инфицировали соответственно rADM-IFN-G-ped или аденовирусом-негативным контролем rADM-blank, а через 24 ч после инфицирования клетки собирали. Клетки дважды промывали предварительно охлаждённым PBS, добавляли лизирующий буфер RIPA (Beyotime, Шанхай), содержащий смесь ингибиторов протеаз, и проводили лизис на льду в течение 30 мин. Лизированную суспензию центрифугировали при 4 °C и 12 000 × g в течение 15 мин, после чего собирали супернатант. Концентрацию белка определяли с помощью набора для количественного определения белка BCA (Beyotime, Шанхай). Каждый образец доводили до концентрации 5 мкг/мкл с помощью буфера для нанесения образцов. Равные объемы белка (по 20 мкг на лунку) после денатурации разделяли методом 10 %-ного SDS-PAGE и переносили на PVDF-мембрану (Qingke Biotechnology Co., Ltd., Сиань). Мембрану разрезали на полоски в соответствии с молекулярной массой целевого белка и внутреннего стандарта. Одну полоску инкубировали при 4 °C в течение ночи с мышиным моноклональным антителом против S-белка PEDV (разбавленным в соотношении 1:1500; любезно предоставлено профессором Чжэн Хунцином из Сяньянского профессионально-технического колледжа); другую полоску инкубировали с мышиным моноклональным антителом против β-тубулина (разбавленным в соотношении 1:2000; Abmart, Шанхай) в качестве контроля загрузки. После промывки обе полоски инкубировали при комнатной температуре в течение 1 часа с меченным горчичной пероксидазой (HRP) козьим вторичным антителом против мышиного IgG Fc (разбавленным в соотношении 1:5000; Abmart, Шанхай). Специфические белковые полосы визуализировали с помощью химилюминесцентного субстрата ECL (MedChemExpress, США). В рамках ИФА клетки HEK 293, культивируемые на покровных стеклах, инфицировали rADM-IFN-G-ped с MOI = 5. Через 48 ч после инфицирования клетки фиксировали 4 %-ным полиформальдегидом, пермеабилизировали 0,1 %-ным Triton X-100 (MedChemExpress, США) и блокировали. Затем их последовательно инкубировали с тем же мышиным моноклональным антителом против S-белка PEDV (разбавленным в соотношении 1:1500), что и для вестерн-блоттинга, а также с FITC-меченным козьим вторичным антителом против мышиного IgG. Ядра клеток окрашивали DAPI (4′,6-диамино-2-фенилиндолом). Флуоресцентный сигнал наблюдали и фиксировали с помощью инвертированного флуоресцентного микроскопа Olympus IX73 (Olympus Corporation, Токио, Япония), оснащенного объективом 20× и CCD-камерой DP80. Неинфицированные клетки HEK 293 и клетки, инфицированные контрольным аденовирусом (rADM-blank), обрабатывали одновременно в качестве отрицательного контроля.
2.4 Иммунизация яичных кур и мониторинг уровня антител 60 яичных кур породы Хайлан Браун в возрасте 25 недель были случайным образом разделены на три группы (по 20 голов в каждой). Группа 1 была иммунизирована рекомбинантной аденовирусной вакциной rADM-IFN-G-ped; группа 2 получила аденовирус rADM-blank в качестве отрицательного контроля; группа 3 была иммунизирована коммерческой инактивированной вакциной против PEDV (Keqian Biotech, Ухань) в качестве положительного контроля. Всем курам-несушкам вакцину вводили инъекцией в грудную мышцу, доза на одну птицу составляла 1 × 10⁸ TCID₅₀. Использовалась схема «первичная вакцинация — ревакцинация», при этом вакцинация проводилась три раза: на 0, 14 и 28-й день. Для мониторинга динамики уровня специфических антител IgY в установленные моменты времени (на 0, 14, 28, 35, 42 и 49-й день после первичной вакцинации) отбирали образцы крови и яиц. В каждый момент времени из каждой группы случайным образом отбирали по 6 несушек и проводили забор крови из крыловой вены (около 1 мл на птицу). После естественного свертывания крови сыворотку отделяли центрифугированием при 4 °C и 12 000 × g в течение 10 минут, разливали в пробирки и хранили при −20 °C. Одновременно в те же моменты времени из каждой группы собирали по 6 яиц, очищали антитела из желтка (IgY) по методу, описанному в разделе 2.5, и хранили при −20 °C.
С помощью метода непрямого ИФА определяли титр специфических антител IgY к PEDV в образцах сыворотки и очищенного яичного желтка. Очищенные цельные вирусные частицы PEDV (5 мкг/мл в буферном растворе на основе карбоната и бикарбоната, 0,05 М, pH 9,6; Solarbio, Пекин) в концентрации 100 мкл/лунка наносили на 96-луночный ELISA-планшет с высокой связывающей способностью (Corning, Нью-Йорк, США) и инкубировали при 4 °C в течение ночи. После трёхкратной промывки PBST (PBS с 0,05 % Tween-20) планшет блокировали в течение 1 часа при 37 °C с помощью PBST, содержащего 1 % бычьего сывороточного альбумина (BSA). При кинетическом мониторинге, исходя из результатов предварительных экспериментов, образцы сыворотки разбавляли в соотношении 1:400, а образцы очищенного IgY — в соотношении 1:200 в PBST, содержащем 1 % BSA, чтобы обеспечить нахождение значений OD₄₅₀ в линейном диапазоне. При определении конечной титры готовили серию дифференциальных разведений (сыворотка — начиная с 1:100, IgY — начиная с 1:50). После инкубации образцов добавляли меченный горчичной пероксидазой (HRP) козье анти-куриный IgY вторичный антитело (Abmart, Шанхай). Окрашивали субстратом TMB, останавливали реакцию 2 М H₂SO₄ и измеряли оптическую плотность при 450 нм. Конечная титровальная концентрация каждого образца определяется как обратная величина наибольшего коэффициента разведения, при котором значение OD₄₅₀ превышает среднее значение OD₄₅₀ образца отрицательного контроля (сыворотка неиммунизированных кур-несушек или IgY) в 2,1 раза. С помощью продольного мониторинга определяется период пика антительного ответа (42–49-й день после иммунизации), чтобы на этом этапе собрать большое количество яиц, максимизировать выход IgY для последующей очистки и проведения испытаний по пассивному иммунизации поросят.
2.5 Получение, очистка и идентификация IgY На основании результатов мониторинга уровня антител яйца, отложенные до и после пика иммунного ответа, собирались для массового получения IgY. Аккуратно отделяют желток и прокатывают его по фильтровальной бумаге для удаления остатков белка. Для очистки используют два проверенных метода осаждения: метод осаждения аммиачной селитры и метод осаждения полиэтиленгликоля (ПЭГ-6000), сравнивая их эффективность и степень очистки; оба метода начинаются с одинаковых этапов предварительной обработки. Предварительная обработка: яичный желток разбавляют холодной деионизированной водой в соотношении 1:9 (объем к объему), pH регулируют до 5,0–5,2 с помощью 0,1 N HCl и инкубируют при 4 °C в течение ночи. Для удаления осадка центрифугируют при 4 °C и 10 000 × g в течение 30 мин, после чего собирают супернатант, содержащий IgY и другие водорастворимые белки. При методе осаждения сульфатом аммония в супернатант медленно добавляют твердый сульфат аммония до 33 %-ной насыщенности, перемешивают при 4 °C в течение 1 ч, после чего центрифугируют; в супернатант продолжают добавлять сульфат аммония до 50 %-ной насыщенности, центрифугируют и собирают осадок, богатый IgY. При методе осаждения с помощью ПЭГ-6000 в предварительно обработанный супернатант непосредственно добавляют твердый ПЭГ-6000 до конечной концентрации 12 % (мас./об.), перемешивают при комнатной температуре в течение 1 часа, затем центрифугируют и удаляют осадок; в супернатант продолжают добавлять ПЭГ-6000 до конечной концентрации 25 % (мас./об.) для осаждения IgY, центрифугируют и собирают осадок. После осаждения с помощью сульфата аммония или ПЭГ-6000 собранный осадок IgY растворяют в фосфатном буфере (PBS, pH 7,4). Затем проводят диализ с использованием диализного мешка из целлюлозного эфира с молекулярным весом удержания (MWCO) 60–80 кДа (Biosharp, Пекин). Диализный мешок предварительно кипятят в деионизированной воде в течение 10 мин и тщательно промывают. Раствор IgY помещают в диализный мешок, оставляя достаточно места для обмена буферным раствором, и герметично закрывают оба конца. Диализный мешок погружают в 2 л PBS (pH 7,4) и проводят диализ при медленном перемешивании на магнитном мешателе при 4 °C. Каждые 6–8 ч заменяют буферный раствор свежим PBS, продолжая диализ в течение 48 ч (всего 6–8 замен буферного раствора). По окончании диализа собрать раствор IgY, центрифугировать при 10 000 × g в течение 15 минут для удаления осадка, а супернатант хранить при −20 °C.
С помощью набора для количественного определения белков BCA (Beyotime, Шанхай) в соответствии с инструкцией измерили концентрацию белка в препаратах IgY, очищенных двумя различными методами. С помощью BSA (Solarbio, Пекин) построили калибровочную кривую, измерили оптическую плотность при 562 нм для расчета и сравнения выхода IgY. Затем чистоту препаратов IgY оценивали с помощью SDS-PAGE и анализа оптической плотности. Образцы (по 10 мкг в каждую лунку) разделяли методом электрофореза в 10 %-ном полиакриламидном геле в восстановительных условиях и окрашивали комасом-брайлом R-250. Изображения гелей анализировали с помощью программного обеспечения ImageJ версии 1.54 (Национальный институт здравоохранения США, Бетесда, Мэриленд, США); чистоту рассчитывали как отношение суммы значений серого тона полос тяжелой цепи IgY (~68 кДа) и легкой цепи (~25 кДа) к общему значению серого тона всех белковых полос в одной полосе. Для подтверждения антигенспецифической реактивности очищенного антитела проводили анализ методом вестерн-блоттинга. Клетки Vero инфицировали вирусом PEDV-NX-2022 с MOI 0,1 на 24 часа. Клетки трижды промывали предварительно охлажденным PBS, добавляли лизирующий буфер RIPA (Beyotime, Шанхай), содержащий смесь ингибиторов протеаз, и проводили лизис на льду в течение 30 минут. Лизират центрифугировали при 4 °C, 12 000 × g в течение 15 минут, после чего собирали супернатант. Концентрацию белка определяли с помощью набора для количественного определения белка BCA и доводили до 5 мкг/мкл с помощью буфера для нанесения образцов. Добавляли необходимое количество 5× буфера для нанесения образцов с SDS и проводили денатурацию при 100 °C в течение 5 мин. Денатурированные белки разделяли методом SDS-PAGE и переносили на PVDF-мембрану. Мембрану инкубировали с очищенным IgY (разведение 1:1500) для обнаружения эпитопа белка S вируса PEDV, а затем с меченным горчичной пероксидазой (HRP) козьим анти-куриным IgY вторичным антителом (разведение 1:5000; Abmart, Шанхай). Для подтверждения нанесения равных объемов мембрану одновременно детектировали с помощью мышиного моноклонального антитела против β-тубулина (разведение 1:2000; Abmart, Шанхай) и меченного HRP козьего вторичного антитела против мышиного IgG (разведение 1:5000; Abmart, Шанхай). Специфическое связывание детектировали с помощью химилюминесцентного субстрата ECL (MedChemExpress, США).
Функциональную нейтрализующую активность очищенного IgY определяли с помощью вирусного нейтрализационного теста (VNT). Препарат IgY разбавляли в геометрической прогрессии и смешивали с равным объёмом раствора, содержащего 100 TCID₅₀ штамма PEDV-NX-2022, после чего инкубировали при 37 °C в течение 1 часа. Затем смесь высевали на монослой сливных клеток Vero в 96-луночном планшете. Устанавливались соответствующие контрольные группы: «только вирус» и «только клетки». Планшеты инкубировали при 37 °C в атмосфере 5 % CO₂, ежедневно наблюдая за появлением цитопатического эффекта (CPE) в течение 5–7 дней. Титр нейтрализации (NT₅₀) выражался как обратное значение максимального кратного разведения антител, защищающего 50 % лунок от CPE, и рассчитывался по методу Рида-Мюнча.
2.6 Пассивный иммунитет поросят и испытания с заражением вирусом
В данном исследовании было отобрано 18 гибридных поросят (Дурок × Чанбай × Дэбай) 4-дневного возраста, у которых с помощью ПЦР был подтвержден отрицательный результат на PEDV. После 1 дня акклиматизации поросят случайным образом разделили на три группы (по 6 голов в каждой). Размер выборки (6 голов в каждой группе) был определен на основе данных об объёме выборки, обычно используемом в опубликованных исследованиях по заражению PEDV [10, 11], а также с учётом этических соображений по сокращению использования животных. 1-я группа являлась экспериментальной (TG): поросят заражали PEDV и лечили IgY, очищенным от иммунизированных куриц-несушек рекомбинантным аденовирусом rADM-IFN-G-ped. Вторая группа — контрольная группа с заражением (CC): поросятам вводили PEDV и назначали IgY, очищенный от несушек, иммунизированных аденовирусом-негативным контролем rADM-blank. Третья группа — группа пустого контроля (BC): заражение не проводилось, поросятам вводили равный объем фосфатного буфера (PBS). В 5-дневном возрасте поросятам групп TG и CC проводили пероральную инактивацию штаммом PEDV-NX-2022 в дозе 1 × 10⁵ TCID₅₀. Доза 20 мг общего IgY на каждый прием была определена на основании предыдущих исследований, которые показали, что 10–30 мг специфического IgY обеспечивают новорожденным поросятам эффективную пассивную защиту от кишечных вирусов. Схема введения (начиная через 12 ч после заражения, один раз каждые 12 ч, всего 5 раз) была разработана с целью обеспечения наличия нейтрализующих антител в просвете кишечника до и во время пика вирусной репликации (обычно через 24–72 ч после заражения [32]). Во всех экспериментах in vivo использовался IgY одной партии, очищенный из яиц, собранных в период пика иммунного ответа (42–49-й день после иммунизации). Данная партия была идентифицирована с помощью SDS-PAGE, анализа оптической плотности, количественного определения по методу BCA, вестерн-блоттинга и теста на нейтрализацию вируса для обеспечения однородности и качества. Все поросята наблюдались в течение 14 дней после заражения. С 0-го по 7-й день после заражения ежедневно регистрировалась выживаемость для последующего анализа кривой выживаемости по Каплану–Мейеру. В течение этого периода ежедневно отбирались ректальные мазки или образцы фекалий для количественного определения вирусной РНК. По достижении конечной точки эксперимента — определяемой как гибель или эвтаназия на 14-й день после заражения — каждому поросенку проводили вскрытие. Фрагменты тканей двенадцатиперстной кишки, тощей кишки и подвздошной кишки собирали, фиксировали в 4 %-ном полиформальдегиде и использовали для гистопатологического исследования.
2.7 Количественное определение вирусной нагрузки и гистопатологический анализ
Из образцов фекалий, собираемых ежедневно, вирусную РНК выделяли с помощью набора QIAamp Viral RNA Mini Kit (QIAGEN, Хильден, Германия) в соответствии с инструкцией. Количественное определение вирусной нагрузки PEDV проводили методом количественной RT-qPCR с использованием метода, разработанного Zheng и др. (2018). В реакции использовались специфические праймеры, нацеленные на ген N вируса PEDV: верхний праймер 5′-AGTACGGGGCTCTAGTGCAG-3′ и нижний праймер 5′-GCTTATCCAAATTCTTC AGGCG-3′. Все реакции проводились на системе для количественной флуоресцентной ПЦР в реальном времени Applied Biosystems 7500 (Thermo Fisher Scientific, Уолтем, Массачусетс, США). Результаты выражались и рассчитывались в виде логарифма по основлению 10 количества копий вирусной РНК на грамм фекалий (log10 количества копий РНК/г). При гистопатологическом исследовании зафиксированные образцы тканей кишечника (двенадцатиперстной кишки, тощей кишки и подвздошной кишки) подвергались стандартной дегидратации, обработке серией прозрачивающих реагентов, заливке в парафин и нарезанию срезами толщиной 4–5 мкм. Затем тканевые срезы окрашивали гематоксилином и эозином (H&E), после чего патологические изменения оценивали под микроскопом. Гистологические изображения получали с помощью прямого оптического микроскопа Nikon Eclipse Ci-L (Nikon Corporation, Токио, Япония) при 40-кратном увеличении.
2.8 Статистический анализ
Весь статистический анализ проводился с использованием программного обеспечения GraphPad Prism (версия 9.0). Перед применением параметрических тестов нормальность распределения данных оценивалась с помощью критерия Шапиро–Уилка, а однородность дисперсий — с помощью критерия Левена. Все количественные данные соответствовали исходным допущениям для параметрического анализа (p > 0,05 для обоих тестов во всех группах). Данные по выживаемости анализировали с помощью метода Каплана–Мейера, а различия между группами сравнивали с помощью критерия лог-ранк. Количественные данные (включая титр антител и чистоту IgY) подвергали однофакторному дисперсионному анализу (one-way ANOVA) с последующим тестом Туки для множественных сравнений. Данные о вирусной нагрузке в кале анализировали с помощью двухфакторного дисперсионного анализа (two-way ANOVA) с последующим тестом Шидака для множественных сравнений, чтобы сравнить различия между группой со специфическим IgY и контрольной группой с IgY на 1–3-й день. Все данные представлены в виде среднего значения ± стандартная ошибка среднего (SEM). Значения p менее 0,05 (p < 0,05) считались статистически значимыми.
3
Результаты
3.1 Создание и анализ экспрессии рекомбинантного аденовируса rADM-IFN-G-ped
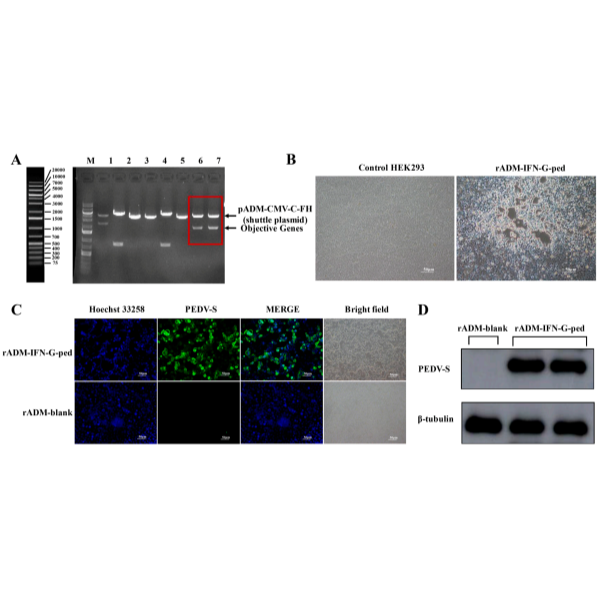
Конструкт гена ChIFN-γ-PEDV-S с оптимизированными кодонами был клонирован в аденовирусную шаттл-плазмиду pADM-CMV-C-FH. Полученная рекомбинантная плазмида pADM-CMV-C-FH-IFN-G-ped после двойного расщепления ферментами AsiSI и MluI дала две четкие полосы размером примерно 1,8 кбп и 5,0 кбп (рис. 1A), что соответствует ожидаемому размеру вставленного гена и линеаризованного каркаса вектора, что подтверждает успешное создание рекомбинантной шаттл-плазмиды. Затем линеаризованную плазмиду pADM-CMV-C-FH-IFN-G-ped совместно с плазмидой-каркасом Ad5 трансфицировали в клетки HEK 293 с целью получения рекомбинантного аденовируса, который был назван rADM-IFN-G-ped. Через 7 дней после трансфекции был отмечен типичный клеточный летальный эффект (CPE), характеризующийся скручиванием клеток и разрушением клеточных стенок, в то время как в контрольных лунках CPE не наблюдался (рис. 1B). Успешная экспрессия антигенной области белка S была подтверждена с помощью теста на комплементарность. Результаты непрямого иммунофлюоресцентного анализа (IFA) с использованием моноклонального антитела против S-белка PEDV показали, что клетки, инфицированные rADM-IFN-G-ped, демонстрировали специфический зелёный флюоресцентный сигнал, в то время как в клетках, инфицированных контрольным аденовирусом rADM-blank, этот сигнал отсутствовал (рис. 1C). Данный результат был дополнительно подтверждён с помощью вестерн-блоттинга. Тот же моноклональный антитело специфически распознавало в лизатах клеток HEK 293, инфицированных rADM-IFN-G-ped, полосу, соответствующую ожидаемой молекулярной массе, тогда как в лизатах клеток, инфицированных rADM-blank, эта полоса отсутствовала. Полоса β-тубулина, использованная в качестве контроля загрузки, подтвердила, что загружено равное количество белка (рис. 1D). Таким образом, эти результаты подтверждают успешное создание рекомбинантного аденовируса rADM-IFN-G-ped, способного эффективно экспрессировать эпитоп белка S PEDV в клетках млекопитающих.
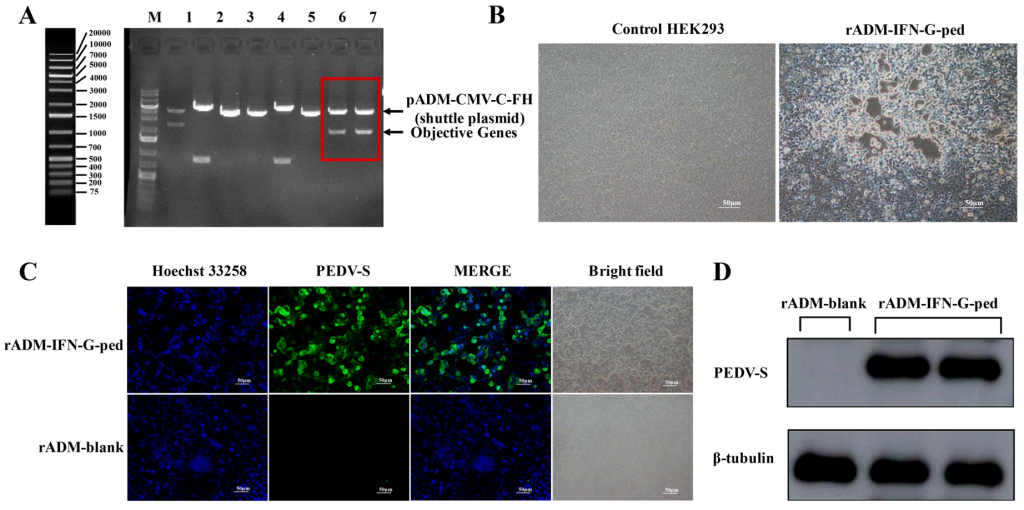
Рис. 1. Конструирование и идентификация рекомбинантного аденовируса rADM-IFN-G-ped. (A) Идентификация рекомбинантной шаттл-плазмиды pADM-CMV-C-FH-IFN-G-ped с помощью ферментативного расщепления. После двойного расщепления ферментами AsiSI и MluI образуются два фрагмента размером примерно 1,8 кбп и 5,0 кбп, которые соответствуют вставленному гену и линеаризованному вектору, соответственно. (B) Спасение rADM-IFN-G-ped в клетках HEK 293. На правом рисунке показан аденовирус-индуцированный эффект клеточной лезии (CPE), на левом — контроль с незаражёнными нормальными клетками. (C) Непрямой иммунофлюоресцентный анализ (IFA) для определения экспрессии антигенной области белка S в клетках HEK 293, инфицированных rADM-IFN-G-ped. (D) Анализ методом вестерн-блоттинга подтвердил экспрессию антигенной области белка S в клетках HEK 293, инфицированных rADM-IFN-G-ped.
3.2 Оценка и выбор оптимального метода очистки IgY
Водорастворимые фракции IgY, очищенные с помощью двух различных методов (осаждение аммиачной селитры и осаждение ПЭГ-6000), были проанализированы методом SDS-PAGE. В препаратах, полученных обоими методами, наблюдались четкие полосы при молекулярной массе около 68 кДа и 25 кДа (рис. 2A), соответствующие тяжелой и легкой цепям IgY соответственно. Качественная визуальная оценка конечных продуктов показала, что препарат, полученный методом PEG-6000, имел однородный, полупрозрачный светло-серо-белый цвет, тогда как препарат, полученный методом осаждения аммиачной селитры, был более мутным, непрозрачным и имел бледно-желтый оттенок (рис. 2B), что свидетельствует о меньшем количестве остаточных липидных/белковых примесей в первом случае. Для объективного сравнения степени очистки с помощью программного обеспечения ImageJ был проведен количественный анализ оптической плотности геля, окрашенного комасом-ясным синим. Рассчитанная чистота составила: 83,3 % для метода с использованием сульфата аммония и 86,3 % для метода с использованием PEG-6000 (рис. 2C). Кроме того, концентрация белка в конечном продукте, определенная методом BCA, показала, что для метода с использованием PEG-6000 (8,18 мг/мл) она была значительно выше, чем для метода с использованием сульфата аммония (7,67 мг/мл) (рис. 2D). Таким образом, исходя из более высокой чистоты, более высокой концентрации конечного белкового продукта и более благоприятных физических свойств (свидетельствующих о меньшем количестве примесей, осаждающихся совместно с белком), во всех последующих крупномасштабных процессах очистки IgY в рамках данного исследования использовался метод осаждения с помощью ПЭГ-6000.
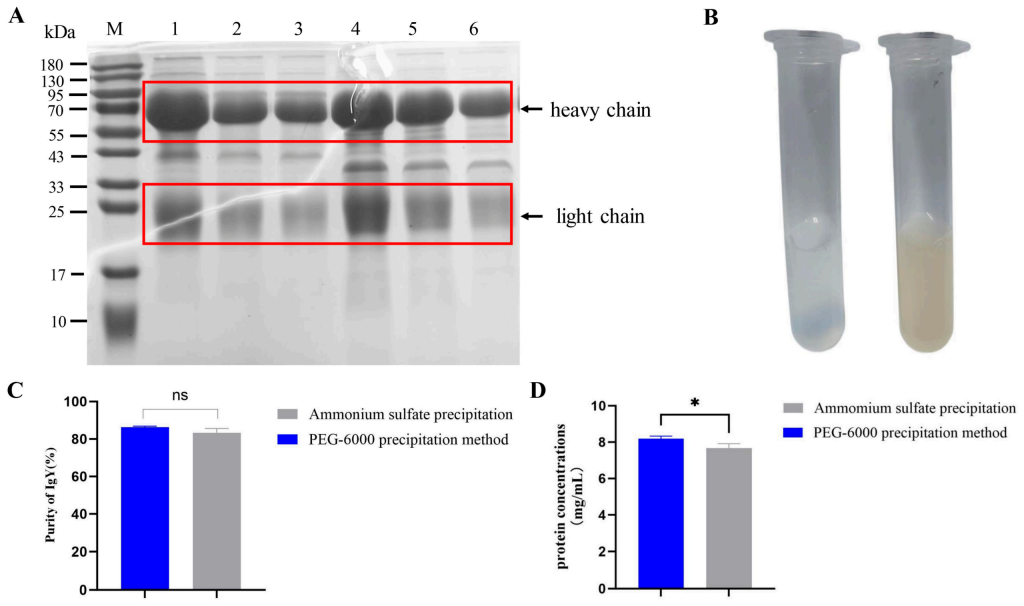
Рис. 2. Сравнение двух методов очистки яичного желтка-антител (IgY). (A) Анализ SDS-PAGE IgY, очищенного методом осаждения аммиумсульфатом (дорожки 1–3) и методом осаждения PEG-6000 (дорожки 4–6). Каждый препарат наносился в трёх степенях разведения (5×, 10× и 20×). Указаны положения тяжёлой цепи IgY (HC, ~68 кДа) и лёгкой цепи (LC, ~25 кДа). (B) Внешний вид конечных продуктов: IgY, полученный методом осаждения с помощью PEG-6000 (слева), и IgY, полученный методом осаждения с помощью сульфата аммония (справа). (C) Количественное сравнение чистоты, полученной с помощью двух методов, на основе анализа оптической плотности с использованием ImageJ. Чистота рассчитывалась как процентное соотношение значений шкалы серого полос тяжелой и легкой цепей IgY к общему значению шкалы серого в дорожке. Данные представлены в виде среднего значения ± SEM; n = 3 независимых очистки. (D) Определение концентрации белка в конечных препаратах IgY методом BCA. Данные представлены в виде среднего значения ± SEM; n = 3 независимых измерения. *: p < 0,05; ns: отсутствие статистически значимых различий (t-критерий Стьюдента).
3.3 Антитела у иммунизированных несушек и нейтрализующая активность IgY
Динамику изменения уровня PEDV-специфических антител в сыворотке крови и желтке иммунизированных несушек отслеживали с помощью ELISA (рис. 3A). Каждая точка на рис. 3A представляет среднее значение OD450 (±SEM), измеренное при фиксированной степень разведения сыворотки (1:400) или желткового IgY (1:200). После первичной вакцинации рекомбинантным аденовирусом rADM-IFN-G-ped уровень антител в сыворотке быстро повышался в течение двух недель. Уровень антител в желтке отставал и до второй ревакцинации оставался на низком уровне. Уровни антител как в сыворотке, так и в желтке достигали пика на второй неделе после третьей вакцинации (на 42–49-й день после первичной вакцинации), что позволило определить этот период как оптимальное окно для сбора яиц с целью максимального получения IgY. Несмотря на то что значения OD₄₅₀ в группе, вакцинированной коммерческой инактивированной вакциной против PEDV, на всех временных точках были несколько выше, чем в группе rADM-IFN-G-ped, общие кинетические тенденции были схожими; значения OD₄₅₀ в желтке обеих групп в целом были ниже соответствующих значений в сыворотке. Конечные титры (рассчитанные по методу, описанному в разделе 2.4) демонстрировали аналогичные кинетические тенденции, что дополнительно подтвердило период пика антительного ответа. Анализ методом вестерн-блоттинга подтвердил специфичность индуцированных антител. IgY, очищенный из куриц, иммунизированных rADM-IFN-G-ped, способен специфически распознавать вирусный антиген PEDV-NX-2022 (рис. 3B). Несмотря на несколько более низкие значения OD в ELISA, функциональная нейтрализующая активность IgY оказалась более высокой. Тест на нейтрализацию вируса (VNT) показал, что титр нейтрализации IgY из группы rADM-IFN-G-ped (1:96) был значительно выше, чем у IgY из группы коммерческой вакцины (1:52) (рис. 3C).
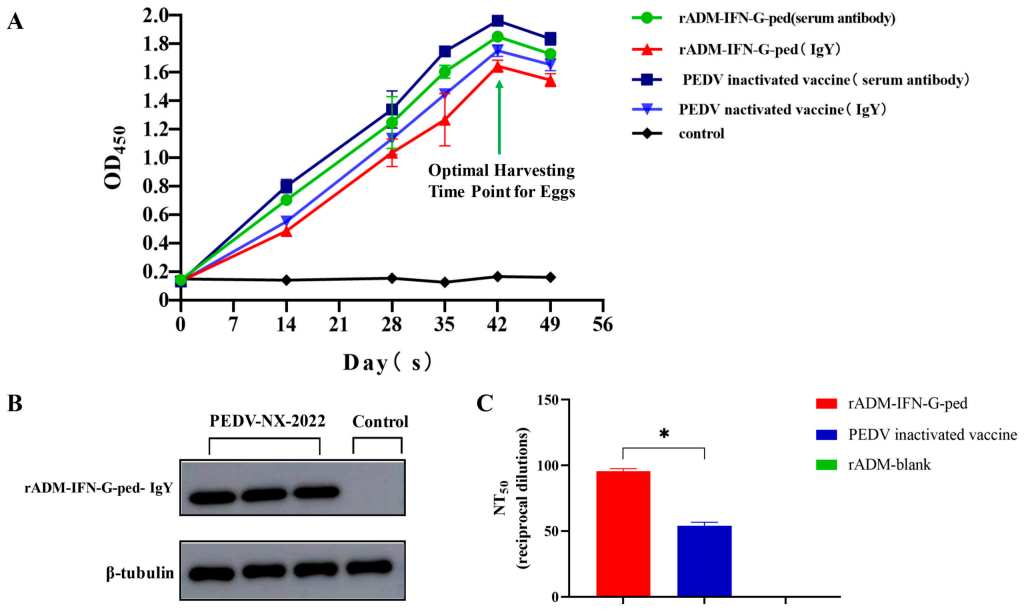
Рис. 3. Антительный ответ у иммунизированных кур-несушек и определение характеристик IgY. (A) Динамика изменения уровня PEDV-специфических антител, определённая методом непрямого ИФА. На основании предварительных экспериментов, проведенных для обеспечения нахождения значений OD₄₅₀ в линейном диапазоне, образцы сыворотки анализировали в разведении 1:400, а образцы IgY из яичного желтка — в разведении 1:200. Каждая точка на графике представляет среднее значение OD₄₅₀ ± SEM для 6 биологических повторений (n = 6). Зеленые стрелки указывают на оптимальный период сбора яиц. Конечный титр (рассчитанный по методу, описанному в разделе 2.4) использовался для подтверждения кинетики антительного ответа, однако на графике для наглядности представлены исходные кинетические кривые OD₄₅₀. (B) Анализ методом вестерн-блоттинга показал специфичность IgY, очищенного из яиц кур, иммунизированных rADM-IFN-G-ped. Очищенный препарат IgY использовался для детектирования очищенных вирусных частиц PEDV. (C) Вируснетрационный титр (VNT, выраженный в NT₅₀) очищенного IgY из групп, иммунизированных rADM-IFN-G-ped и коммерческой вакциной. Данные представлены в виде средних значений ± SEM; *, p < 0,05 (t-критерий Стьюдента).
3.4 Пассивная иммунная защита поросят с помощью IgY от летального заражения вирусом PEDV
В модели пассивного иммунизации и заражения 5-дневных кормящихся поросят была оценена защитная эффективность IgY (очищенного из иммунизированных кур-несушек с помощью rADM-IFN-G-ped). После перорального заражения сильным штаммом PEDV-NX-2022 поросята, получившие специфический IgY, продемонстрировали значительно лучшие результаты по сравнению с поросятами, получившими контрольный IgY (очищенный из иммунизированных кур-несушек rADM-blank). Разница в выживаемости между группами была значительной (табл. 1): в группе, получившей специфический IgY, выживаемость составила 50 % (3 из 6), тогда как в группе контрольного IgY все поросята погибли (0 из 6). Поросята из контрольной группы, не подвергавшиеся заражению, оставались здоровыми на протяжении всего периода исследования. Анализ выживаемости по Каплану–Мейеру (рис. 4A) подробно иллюстрирует динамику летальных исходов: все случаи гибели в группе контрольного IgY произошли на 2–4-й день после заражения, тогда как в группе специфического IgY погибли только 3 поросенка, причем на 3-й и 4-й день. Вирусологический мониторинг методом RT-qPCR показал, что пероральное введение специфического IgY эффективно подавляет репликацию вируса в кишечнике. Хотя у всех животных, подвергшихся заражению, вирусная экскреция с калом достигала пика примерно на 2-й день после заражения, средняя вирусная нагрузка в контрольной группе с IgY на 1-й, 2-й и 3-й дни после заражения была значительно выше, чем в группе, получавшей специфический IgY (рис. 4B). Раннее снижение вирусной экскреции соответствовало более быстрому исчезновению клинических симптомов диареи. Указанные результаты свидетельствуют о том, что IgY, нацеленные на эпитопы белка S PEDV, способны нейтрализовать вирус в кишечнике, тем самым снижая его репликацию, смягчая тяжесть заболевания и обеспечивая новорожденным поросятам значительную защиту от летального заражения PEDV.
Таблица 1. Статистика заболеваемости поросят в каждой группе
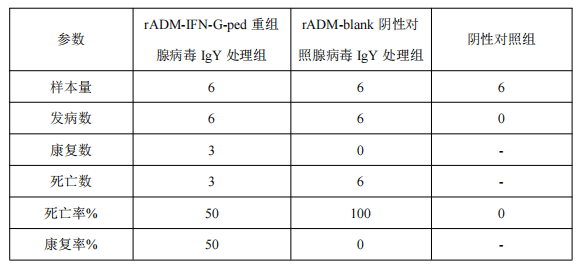
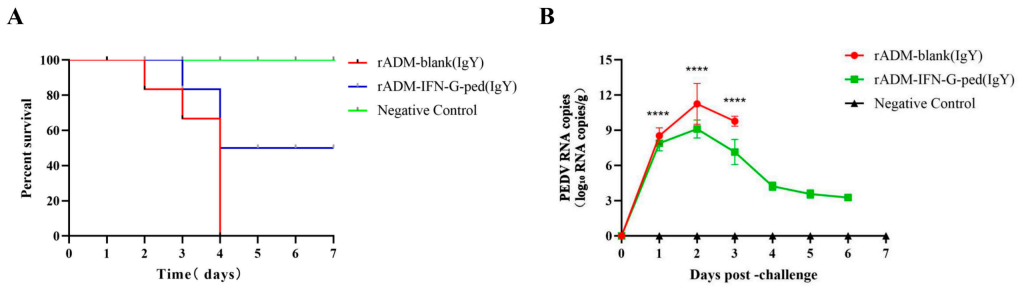
Рис. 4. Пассивный иммунитет с использованием IgY повышает выживаемость поросят, подвергшихся заражению PEDV, и снижает вирусную нагрузку. (A) Кривые выживаемости по Каплану–Мейеру для поросят из разных групп после заражения PEDV. (B) Ежедневная вирусная экскреция с калом в период с 0-го по 7-й день после заражения, выраженная в виде log₁₀ количества копий РНК PEDV на грамм кала, определённого методом RT-qPCR. Данные представлены в виде средних значений ± SEM. Статистическое сравнение между группой со специфическим IgY и контрольной группой IgY на 1–3-й день проводилось с помощью двухфакторного дисперсионного анализа (two-way ANOVA) с последующим тестом Шидака для множественных сравнений (****, p < 0,0001).
3.5 Гистопатологический анализ
Макроскопическое и микроскопическое исследование показало, что у поросят, подвергшихся заражению PEDV, наблюдались выраженные повреждения кишечника, тогда как лечение специфическим IgY позволяло значительно уменьшить эти повреждения. Репрезентативные результаты вскрытия представлены на рис. 5A. По сравнению с нормальной морфологией кишечника в контрольной группе, не подвергавшейся заражению, у поросят из контрольной группы, получавшей IgY (группа rADM-blank), наблюдались выраженная дилатация кишечника, истончение кишечной стенки с наличием непереваренных сгустков молока (черные стрелки), гиперемия мезентериальных капилляров (зеленые стрелки), а также отек мезентериальных и паховых лимфатических узлов (красные стрелки). В отличие от этого, у поросят из группы, получавшей специфический IgY (группа rADM-IFN-G-ped), целостность кишечника была значительно восстановлена, и лишь в подвздошной кишке наблюдалось незначительное скопление жидкости (синяя стрелка). Гистопатологический анализ участков кишечника, окрашенных по методу H&E, более подробно подтвердил вышеуказанные данные (рис. 5B). В двенадцатиперстной кишке, по сравнению с контрольной группой без заражения, у которой структура ворсин оставалась неповрежденной, в группе с контрольным IgY наблюдалось притупление ворсин (черная стрелка), значительное уменьшение количества бокаловидных клеток (желтая стрелка) и гиперемия капилляров собственного слоя (зеленая стрелка); в группе со специфическим IgY структура ворсин восстановилась, а бокаловидные клетки были представлены в большом количестве (желтая стрелка). В тощей кишке в контрольной группе с IgY наблюдались выраженная атрофия ворсин и отслойка эпителия (черные стрелки), а также гиперемия капилляров (зеленые стрелки); в группе со специфическим IgY сохранялись хорошо развитые целые ворсины без выраженной некроза или воспалительного инфильтрата. В подвздошной кишке в контрольной группе с IgY наблюдалось очаговое укорочение ворсинок (черная стрелка) и капиллярная гиперемия (зеленая стрелка); в группе со специфическим IgY структура ворсинок и целостность эпителия сохранились. Таким образом, эти результаты показывают, что лечение специфическим IgY против PEDV значительно смягчает характерные макроскопические изменения и гистопатологические повреждения, вызванные инфекцией PEDV, и защищает целостность слизистой оболочки кишечника во всех исследованных отделах кишечника.
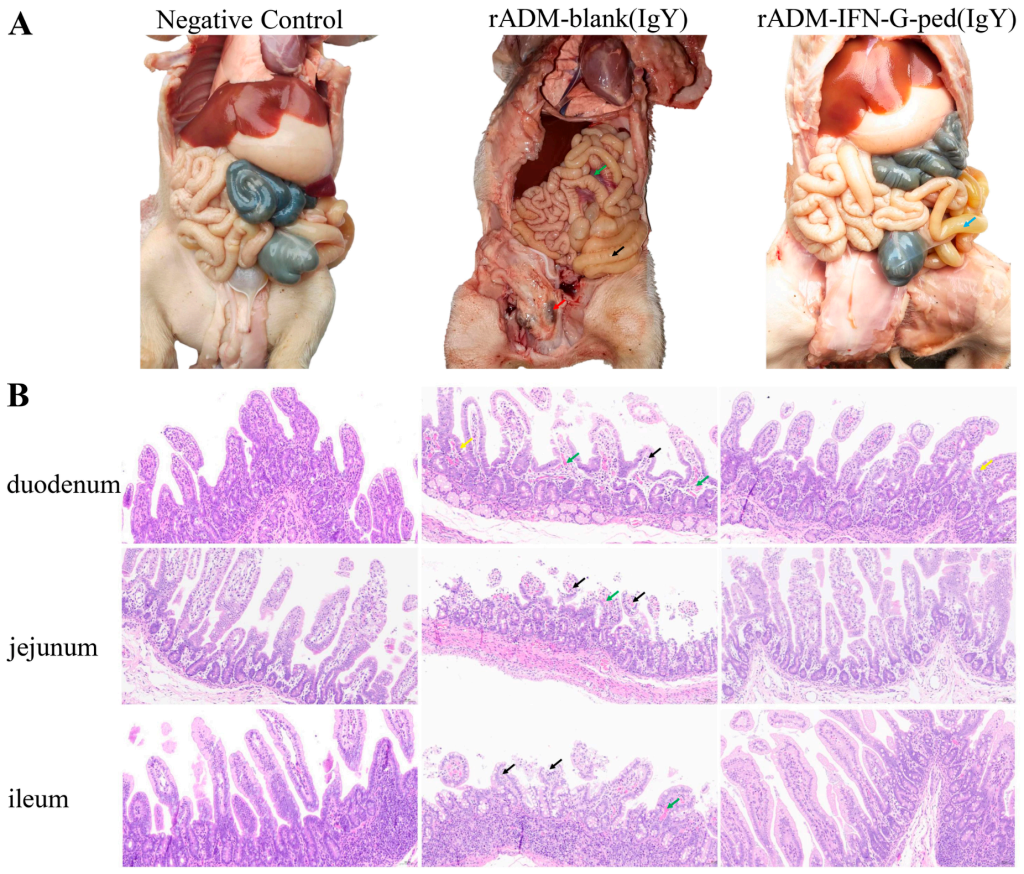
Рис. 5. Гистопатологический анализ тканей кишечника. (A) Характерные макроскопические изменения, наблюдавшиеся при вскрытии поросят из разных групп. (B) Окрашенные по Гимзе-Эйвинг (H&E) срезы тканей двенадцатиперстной кишки, тощей кишки и подвздошной кишки. Изображения получены с помощью прямого оптического микроскопа Nikon Eclipse Ci-L (Nikon Corporation, Токио, Япония) при 40-кратном увеличении.
4
Обсуждение
Существующие стратегии профилактики и борьбы, основанные на вакцинации свиноматок, зачастую не способны индуцировать достаточный уровень слизистого иммунитета, в результате чего поросята остаются восприимчивыми к инфекции. В данном исследовании мы доказали, что новая рекомбинантная аденовирусная вакцина rADM-IFN-G-ped эффективно стимулирует выработку нейтрализующего IgY у несушек. Пероральное введение этих антител обеспечивает новорожденным поросятам значительную защиту от летального заражения вирусом PEDV-NX-2022, что проявляется в повышении выживаемости, снижении вирусной экскреции и уменьшении патологических повреждений кишечника.
Спикульный гликопротеин PEDV играет двойную роль в установлении инфекции и индукции нейтрализующих антител, что делает его ключевой мишенью для рациональной разработки аттенуированных живых вакцин и субъединичных вакцин. Однако в некоторых исследованиях высказываются опасения, что вакцины, содержащие полноразмерный белок S, могут потенциально вызывать нежелательный иммунный ответ или эффекты, не связанные с целевым антигеном. Примечательно, что Thavorasak и др. (2022) с помощью технологии фагопрезентации и специфического моноклонального антитела (mAbG3) идентифицировали в белке S усиливающий эпитоп. Это антитело связывается с несколькими несоседними эпитопами в субдомене S1-0 субъединицы S1 и, как оказалось, неожиданно усиливает инвазию PEDV в клетки Vero, не обладающие Fc-рецепторами. Чтобы развеять подобные опасения, в рамках данной работы в качестве вакцинной стратегии специально использовался тандемный конструкт, состоящий из четырёх выбранных B-клеточных эпитопных доменов белка S PEDV, а не полноразмерного белка. Такая мультиэпитопная стратегия направлена на фокусирование иммунного ответа на ключевых нейтрализующих доменах, одновременно позволяя избежать вмешательства в формирование защитного иммунного ответа со стороны иммунодоминантных, но не нейтрализующих или слабо нейтрализующих участков. Нейтрализующие антитела оказывают защитное действие путем прямого связывания с ключевыми структурами патогена — такими, как гликопротеины на поверхности вируса — и, таким образом, блокируют проникновение в клетки хозяина и последующую инфекцию. Поэтому титр нейтрализующих антител широко считается одним из «золотых стандартов» для оценки иммуногенности вакцин. Несмотря на то, что общий титр IgY (определённый методом ELISA) у кур-несушек, вакцинированных коммерческой инактивированной вакциной против PEDV, был несколько выше, IgY, полученный из группы, вакцинированной данной рекомбинантной аденовирусной вакциной, демонстрировал значительно более высокий титр нейтрализующих антител (NT₅₀ 1:96 по сравнению с 1:52) . Хотя это наблюдение обнадеживает и соответствует целям дизайна, направленного на фокусированный иммунный ответ, мы предупреждаем, что его не следует интерпретировать как достоверное доказательство функционального преимущества по сравнению с другими вариантами дизайна антигена. В данном исследовании отсутствовала группа прямого сравнительного анализа, в которой иммунизация проводилась бы с использованием полного S-белка, экспрессируемого на том же аденовирусном каркасе. Таким образом, повышенная нейтрализующая активность может быть обусловлена многоэпитопным дизайном, коэкспрессией ChIFN-γ или внутренними свойствами аденовирусной векторной платформы. Тем не менее, эти результаты подтверждают иммуногенность многоэпитопных конструкций и их способность индуцировать мощные нейтрализующие антитела, что подтверждает применимость данного конкретного дизайна для пассивного иммунизации.
Результаты данного исследования in vivo не только подтвердили выводы предыдущих исследований по пассивному иммунизации против PEDV с использованием IgY, но и расширили их. В данном исследовании все поросята из контрольной группы, получившей IgY, погибли, тогда как в группе, получившей специфический IgY, выжило и выздоровело 50 % поросят. Этот показатель выживаемости несколько превышает 49,24 %, о которых сообщали Kweon и др. (2000) при использовании IgY, полученного из инактивированного цельного вируса, но значительно ниже 100 %-ного показателя защиты, о котором сообщали Lee и др. (2015) при использовании IgY, направленного против рекомбинантного домена S1. Мы предполагаем, что эти различия могут быть обусловлены различиями в дизайне антигена, дозировке IgY, схеме введения или вирулентности и дозе вируса, использованного в эксперименте. Важно отметить, что в экспериментальной группе вирусная нагрузка в фекалиях значительно снизилась на 1–3-й день после заражения, что служит прямым вирусологическим доказательством способности перорально введенного IgY нейтрализовать вирус в просвете кишечника, тем самым прерывая его репликацию и снижая загрязнение окружающей среды. Эта вирусологическая эффективность лежит в основе наблюдаемого улучшения клинических симптомов и повышения выживаемости.
Следует признать наличие ряда ограничений в данном исследовании. Во-первых, в эксперименте по заражению использовался только один штамм G2b (PEDV-NX-2022); учитывая значительное генетическое и антигенное разнообразие белка S PEDV между линиями G1, G2a, G2b и S-INDEL, эффективность перекрестной защиты данного IgY в отношении гетерологичных штаммов пока не подтверждена, и даже в пределах линии G2b вариабельность диких штаммов может ограничивать его универсальность. Во-вторых, концептуальные преимущества многоэпитопного дизайна по-прежнему носят предположительный характер, поскольку в данном исследовании отсутствует прямое сравнительное исследование с IgY, индуцированными полноразмерным белком S или другими формами антигена, доставленными с помощью того же аденовирусного каркаса. Таким образом, конкретный вклад многоэпитопной архитектуры невозможно точно количественно оценить. В-третьих, хотя размер выборки (по 6 птиц в каждой группе) был достаточным для выявления статистически значимых различий в выживаемости, по-прежнему требуются исследования более крупного масштаба для подтверждения защитной эффективности и оценки полевой изменчивости. В-четвертых, схема введения IgY, использованная в данном исследовании (по 20 мг за раз, всего 5 раз в течение 60 ч), была разработана в контролируемых экспериментальных условиях с целью максимального повышения эффективности; в будущих работах следует определить схему минимальных эффективных доз, пригодную для полевого применения, упростить график введения и разработать практичные методы доставки. Таким образом, данное исследование подтвердило концептуальную осуществимость использования мультиэпитопного IgY на основе аденовирусного вектора в качестве стратегии дополнительной пассивной иммунизации против PEDV, подчеркнув потенциал платформы «яйценосные куры — IgY» в области быстрого и масштабного производства антител.
5
Выводы
В рамках данного исследования удалось создать новый рекомбинантный аденовирус rADM-IFN-G-ped, кодирующий четыре ключевых нейтрализующих эпитопных участка белка S G2b вируса PEDV и куриный IFN-γ в качестве молекулярного адъюванта. Иммунизация несушек этим конструктом вызывает мощный специфический к PEDV гуморальный иммунный ответ, что позволяет получать IgY с высоким титром. Очищенный IgY продемонстрировал in vitro высокую вируснеутрализующую активность, причем титр NT₅₀ (1:96) значительно превышал титр IgY, полученного из коммерческих инактивированных вакцин (1:52). В модели пассивного иммунизации и заражения новорождённых поросят (по 6 голов в каждой группе) пероральное введение этого специфического IgY улучшило клинические исходы, включая выживаемость 50 % (в контрольной группе — 0 %), а также значительно снизило количество вируса, выделяемого с калом, на ранней стадии инфекции. Гистопатологическое исследование дополнительно показало, что обработка IgY смягчает индуцированное PEDV повреждение кишечника, включая атрофию ворсинок, некроз эпителия и воспалительную инфильтрацию. Обобщая вышеуказанные предварительные результаты, данное исследование предоставляет подтверждение концепции использования платформы «яйценосные куры — аденовирус — IgY» в качестве реалистичной стратегии для производства патогенспецифических антител против PEDV. Однако, учитывая ограниченный размер выборки и контролируемые условия эксперимента, эти результаты следует интерпретировать с осторожностью и рассматривать лишь как начальный этап подтверждающих исследований. Использованные в данной работе дозы IgY и схема введения служат основой для будущей оптимизации, однако требуются дальнейшие исследования с более крупной выборкой и в разнообразных полевых условиях для подтверждения защитной эффективности и оценки перспектив более широкого применения данного метода у новорожденных поросят.